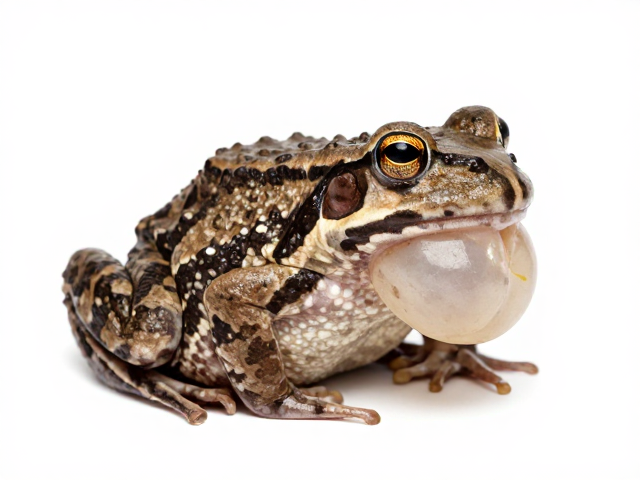
冬眠期蛙类体色变深的生理机制
许多两栖动物在冬季来临前会经历显著的外观变化,其中体色加深是越冬适应策略中的重要一环。这种色泽转变并非单一因素作用的结果,而是黑色素细胞在低温诱导下活跃迁移至表皮层的生理反应。当环境温度下降,蛙类体内的激素水平发生波动,促使黑色素颗粒扩散并覆盖全身,这种生理过程直接导致皮肤整体色调向深褐色或黑色过渡。
深色的体表在生物学功能上扮演着多重角色。一方面,深色皮肤能更有效地吸收环境中的微弱热量,有助于维持基础体温,减缓新陈代谢所需的能量消耗;另一方面,较深的体色能增强伪装效果,使蛙类在枯叶、深色泥土或岩石缝隙中更难被越冬期间的捕食者发现。这种由环境压力驱动的体色调整,是蛙类在长期进化中形成的生存智慧,直接关联着其在寒冷季节的存活率。
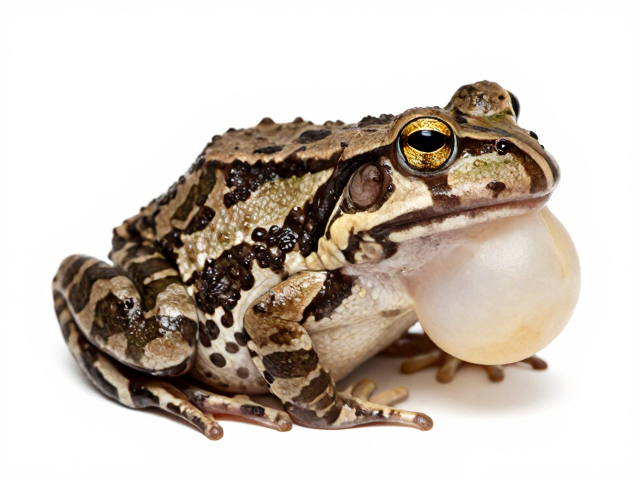
体表斑纹与声波传播的物理关联
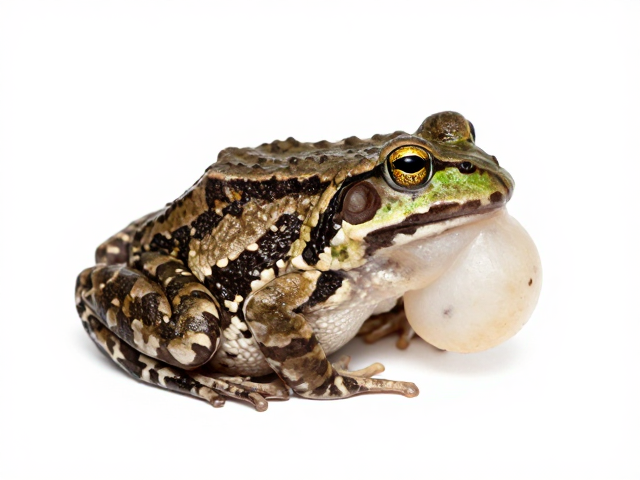
蛙类体表的复杂斑纹不仅是视觉信号,更可能与发声系统的功能效率存在潜在联系。声囊作为蛙类发声的核心共鸣结构,其膨胀程度直接影响声音的频率和传播距离。研究表明,某些蛙类在繁殖期或非繁殖期的体色与斑纹分布,会随声囊的充血状态产生微妙的视觉配合。虽然体色主要受色素调控,但皮肤下的血管分布与声囊的血液循环存在解剖学上的邻近关系,这可能间接影响皮肤的光泽度与颜色饱和度。
在冬眠期,蛙类停止鸣叫,声囊处于收缩状态,此时体色变深且斑纹可能因皮肤张力变化而显得更为清晰或融合。这种状态下,体表斑纹的对比度降低,形成一种统一的深色背景,有助于减少视觉上的突兀感。这种视觉上的“静止”与生理上的“休眠”相辅相成,使得蛙类在不需要通过声音进行领域宣示或求偶时,能够通过体色和斑纹的最大化隐蔽性来规避风险。
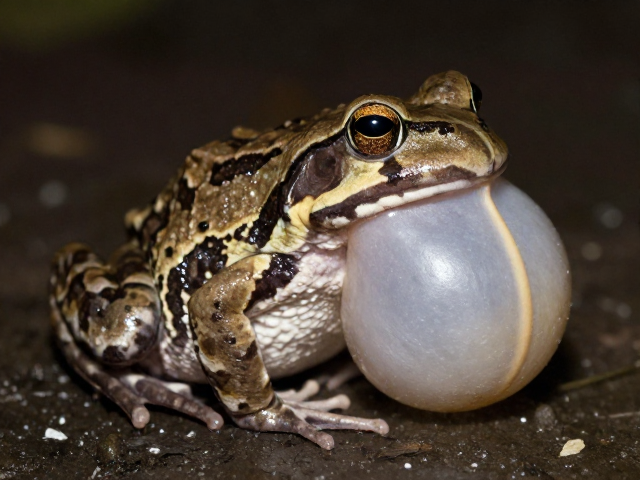
冬眠期声囊收缩与代谢降低的协同效应
冬眠期间,蛙类的生理活动大幅减缓,声囊肌肉完全放松,不再参与发声过程。这种收缩状态减少了声囊区域的能量代谢需求,使得该区域的血液流动减慢,进而影响局部皮肤的颜色表现。与繁殖期声囊膨胀时因充血而呈现的鲜艳色彩不同,冬眠期的声囊区域颜色通常与周围皮肤一致,呈现暗沉色调,这是整体体色变深的一部分。
这种生理机制的协同作用体现在能量管理的整体策略上。停止发声不仅节省了肌肉运动的能量,也避免了因声囊膨胀可能带来的组织损伤风险。在低温环境下,保持声囊收缩状态有助于减少体表散热面积,配合深色皮肤吸收热量,共同维持核心器官的功能稳定。因此,体色变深与声囊收缩是蛙类在冬季应对环境压力、优化能量使用的两个并行且相关的生理过程。
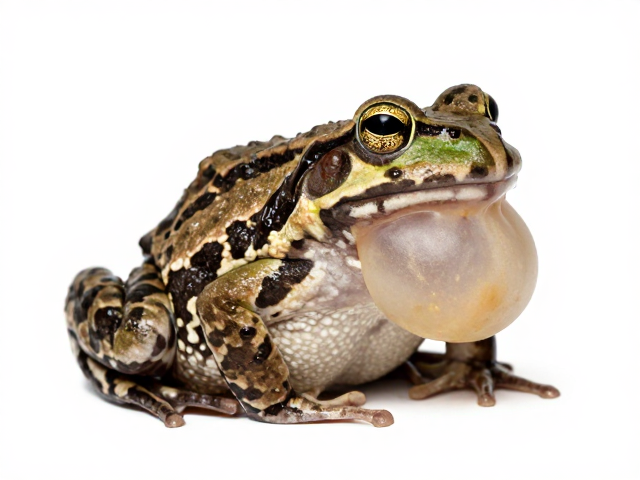
环境温度对体色与发声行为的调控路径
温度是调控蛙类体色和发声行为的关键环境变量。随着冬季气温持续走低,蛙类体内的酶活性降低,新陈代谢速率下降,这直接抑制了黑色素合成的某些中间产物,但同时也促进了黑色素在表皮层的稳定沉积,导致体色加深。与此同时,低温会显著抑制蛙类的神经兴奋性,使其完全停止鸣叫行为,声囊因此保持静止收缩状态。
在实验室观察中,将冬眠蛙类置于逐渐升温的环境中,可以观察到体色逐渐变浅以及声囊在适宜温度下恢复潜在的膨胀能力。这一过程证实了体色变化和发声能力的丧失并非永久性损伤,而是可逆的生理调节。环境温度的波动通过神经内分泌系统同时调控色素细胞和发声肌肉的状态,确保了蛙类在不同季节中采取最适宜的生存策略。
物种差异在体色与声囊表现中的体现
不同种类的蛙类在冬眠期的体色变化和声囊表现存在显著差异,这反映了物种间生态位的多样性。例如,树蛙通常栖息于植被丰富区域,其冬眠体色可能更偏向于与树皮或枯叶融合的绿色或棕色,而穴居蛙类则更倾向于深黑色以匹配土壤环境。这种差异并非随机,而是与其冬眠微生境的背景颜色高度相关,体现了自然选择对隐蔽性的严格筛选。
声囊的结构大小和位置在不同物种中也有所不同,这影响了其在冬眠期的表现。拥有大型外声囊的蛙类,其声囊在收缩时可能在背部或喉部形成明显的凹陷或褶皱,这些结构在体色变深后可能更加明显,形成特殊的纹理特征。相比之下,无外声囊或内声囊的蛙类,其体表变化主要体现在整体色素分布的均匀化,缺乏明显的局部结构变化。这种物种间的差异展示了蛙类在适应冬季环境时的多样化生物学策略。