红褐色体表斑纹的生物学成因与表型特征
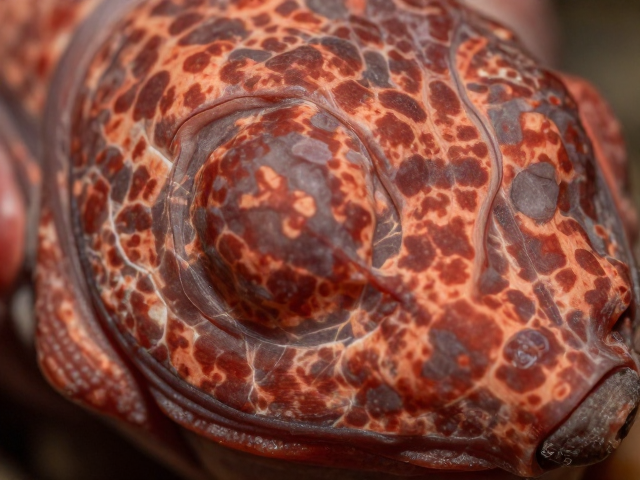
红褐色体表斑纹并非单一物种的专属特征,而是广泛存在于多种两栖类、爬行类及少数哺乳动物中的显性基因表达结果。这种色彩表现主要源于真皮层或皮下组织中黑色素细胞与类胡萝卜素沉积的相互作用,其中真黑素呈现深褐色,而褐黑素则偏向红棕色。在角质层较薄的个体中,色素沉积更直接地透过表皮显现,使得红褐色斑纹具有更高的色彩饱和度和边缘清晰度。这种生理结构特征常见于树蛙科或某些蝾螈物种,其角质层厚度通常不足0.1毫米,缺乏厚实的角质保护机制,使得体色成为环境适应与种内识别的核心视觉信号。
从微观结构来看,薄角质层下的色素细胞分布呈现出高度的非规则性,这导致了斑纹在宏观视觉上具有独特的随机拓扑结构。与厚角质层物种常见的块状色块不同,薄角质层物种的红褐色斑纹往往表现为细碎的点状或不规则的网状分布。这种形态特征在生物分类学中具有极高的辨识度,因为色素细胞的排列密度和分布模式会因个体发育过程中的微环境差异而产生细微但可测量的变异。研究人员通过高分辨率显微成像技术,能够精确记录这些斑纹的几何参数,为种群遗传学研究提供重要的形态学数据支持。
生物识别逻辑中的形态特征提取与匹配
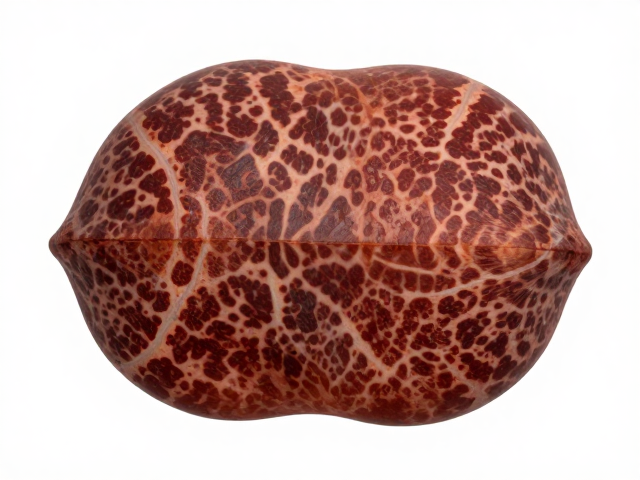
在生物识别领域,利用红褐色斑纹进行个体识别依赖于计算机视觉算法对高对比度特征的提取能力。由于红褐色与周围环境(如绿色植被或深色土壤)存在显著的光谱差异,基于颜色分割的算法能够快速锁定目标区域。识别逻辑的核心在于构建斑纹特征的向量空间,将每个个体的斑纹位置、面积占比、颜色深浅值转化为多维数据向量。通过计算不同个体向量之间的欧氏距离或余弦相似度,系统能够判断两个样本是否来自同一生物个体。这种逻辑不依赖于面部或指纹等刚性特征,而是利用体表斑纹在生长过程中保持相对稳定的拓扑关系进行身份锚定。
为了提升识别的准确率,现代生物识别系统引入了深度学习模型,特别是卷积神经网络(CNN),用于处理薄角质层物种因光线反射和皮肤湿润度变化带来的图像噪声。模型训练数据通常包含同一物种在不同光照、角度和生长阶段的数千张样本图像。通过迁移学习,模型能够学习到红褐色斑纹的边缘锐度、颜色渐变规律以及斑点间的连接关系。在实际应用中,识别过程会将输入图像的特征嵌入到高维空间中,与数据库中的已知个体特征进行比对。当相似度评分超过预设阈值(例如0.95以上)时,系统即可确认个体身份,这一过程在野生动物保护追踪中已被验证具有高度的可靠性。
稀有变异特征的遗传基础与环境互作
红褐色体表斑纹的稀有变异通常由单基因或多基因位点的突变引起,这些突变影响了色素合成途径中的关键酶活性或转运蛋白功能。例如,某些特定等位基因的缺失或表达下调会导致褐黑素合成受阻,从而使原本深色的个体呈现出浅红褐色或褪色斑纹。这种遗传变异在自然种群中出现的频率极低,往往与近亲繁殖或基因漂变有关。通过全基因组测序技术,科学家已经定位到多个与体色变异相关的候选基因,这些基因的表达水平会受到温度、湿度等环境因素的调控,形成了基因型与环境互作(GxE)的复杂网络。
环境压力会显著影响稀有变异特征的显现程度。在低温环境下,某些两栖动物的色素细胞活性降低,红褐色斑纹可能变得模糊或颜色变浅;而在高温环境下,色素沉积加速,斑纹颜色加深且边界更加清晰。这种可塑性使得同一基因型的个体在不同生境中表现出不同的表型特征。长期野外监测数据显示,在栖息地破碎化严重的区域,由于种群隔离,稀有变异特征的出现频率高于连通性良好的区域。这种现象为研究种群遗传结构演化提供了重要线索,同时也提醒我们,保护生物多样性需要关注那些具有独特遗传特征的稀有表型群体,避免其在自然选择过程中因适应性劣势而消失。